- ენერგიის სენსორული კასკადი: AMPK და SIRT1 მიტოქონდრიული ზრდის ტრიგერები
- PGC-1α: მთავარი გადამრთველი ბირთვული და მიტოქონდრიული პროგრამების კოორდინირებისთვის
- TFAM და mtDNA რეპლიკაცია: მიტოქონდრიული ქარხნის დასრულება
- ფიზიოლოგიური შედეგები: მეტაბოლური ტევადობის და უჯრედული მდგრადობის გაძლიერება
- ხშირად დასმული კითხვები
თქვენი უჯრედები მუდმივად წარმოქმნიან ახალ მიტოქონდრიებს ენერგიის მოთხოვნის ზრდის საპასუხოდ, პროცესს, რომელსაც მიტოქონდრიული ბიოგენეზი ეწოდება და რომელიც ვარჯიშის, შიმშილისა და თერმული სტრესის მეტაბოლურ ადაპტაციას ეფუძნება. ეს უჯრედული მექანიზმი მოიცავს სიგნალის მოვლენების კოორდინირებულ ჯაჭვს, რომელიც ფოკუსირებულია მთავარი რეგულატორი ცილის PGC-1α (პეროქსიზომის პროლიფერატორით გააქტიურებული რეცეპტორის გამა კოაქტივატორი 1-ალფა) გარშემო, რომელიც მართავს როგორც ბირთვულ გენების ექსპრესიას, ასევე მიტოქონდრიული დნმ-ის რეპლიკაციას.
ძირითადი მიგნებები
- მიტოქონდრიული ბიოგენეზი იწყება ენერგეტიკული სტრესის სიგნალებით, მათ შორის ვარჯიშით, შიმშილით, ცივი ზემოქმედებითა და კალორიების შეზღუდვით
- PGC-1α ცილა მოქმედებს როგორც ცენტრალური “მთავარი გადამრთველი”, რომელიც აქტიურდება ენერგიის სენსორებით AMPK და SIRT1, როდესაც უჯრედული ATP დონე იკლებს
- ახალი მიტოქონდრიები საჭიროებენ ბირთვული გენებით კოდირებული ცილების კოორდინირებულ სინთეზსა და მიტოქონდრიული დნმ-ის რეპლიკაციას ტრანსკრიფციის ფაქტორ TFAM-ის მეშვეობით
- მიტოქონდრიული მასის ზრდა აუმჯობესებს უჯრედული ენერგიის წარმოების უნარს და მეტაბოლურ მდგრადობას
მიტოქონდრიული ბიოგენეზი: უჯრედული ტრიგერები და რეგულატორული გზა
ძირითადი სიგნალის მოლეკულები და მათი აქტივაცია ენერგიის მოთხოვნის საპასუხოდ
ვარჯიშის ფიზიოლოგიის და უჯრედული სტრესის პასუხის ლიტერატურის საფუძველზე | Georgian Medical Journal News
ენერგიის სენსორული კასკადი: AMPK და SIRT1 მიტოქონდრიული ზრდის ტრიგერები
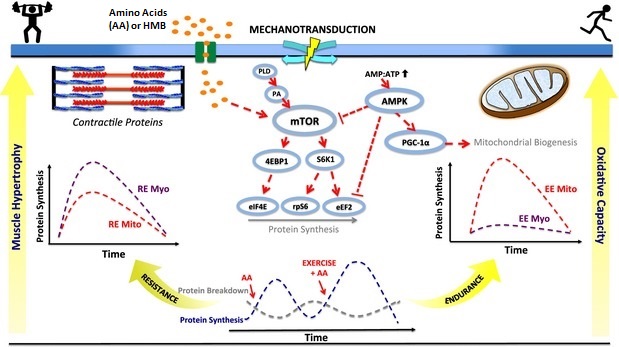
მიტოქონდრიული ბიოგენეზი იწყება უჯრედული ენერგიის დეფიციტით. როდესაც ATP (ადენოზინ ტრიფოსფატი) დონე იკლებს ვარჯიშის ან შიმშილის დროს, ორი ძირითადი ენერგიის სენსორული ცილა აქტიურდება: AMPK (AMP-გააქტიურებული ცილის კინაზა) და SIRT1 (NAD+-დამოკიდებული დეაცეტილაზა). ორივე მგრძნობიარეა უჯრედული ენერგიის მუხტის ცვლილებებზე — კერძოდ, AMP-ის ზრდა და NAD+-ის შემცირება სიგნალიზაციას ახდენს ენერგიის წარმოების უნარის ზრდის საჭიროებაზე.
AMPK პირდაპირ ფოსფორილირებს PGC-1α-ს, ხოლო SIRT1 დეაცეტილირებს მას; ორივე მოდიფიკაცია ზრდის PGC-1α-ს აქტივობას. ეს ორმაგი აქტივაცია უზრუნველყოფს, რომ მხოლოდ ნამდვილი ენერგეტიკული სტრესი — და არა შემთხვევითი მეტაბოლური ხმაური — იწვევს ახალი მიტოქონდრიების აშენების ძვირადღირებულ პროცესს. ეს სარეზერვო უზრუნველყოფა სისტემის მდგრადობას, პრინციპი, რომელიც დოკუმენტირებულია უჯრედული სტრესის პასუხის კვლევაში.
PGC-1α: მთავარი გადამრთველი ბირთვული და მიტოქონდრიული პროგრამების კოორდინირებისთვის
როგორც კი აქტიურდება, PGC-1α მოქმედებს როგორც ტრანსკრიფციული კოაქტივატორი, რომელიც უკავშირდება და აძლიერებს ბირთვული ტრანსკრიფციის ფაქტორების, მათ შორის NRF1 (ბირთვული რესპირატორული ფაქტორი 1) და NRF2-ს აქტივობას. ერთად, ეს ფაქტორები ზრდიან ბირთვული გენების ექსპრესიას, რომლებიც კოდირებენ მიტოქონდრიულ ცილებს — ციტრონის მჟავას ციკლის ფერმენტებს, ელექტრონული ტრანსპორტის ჯაჭვის კომპონენტებს და ცილებს, რომლებიც საჭიროა mtDNA-ის რეპლიკაციისა და შეკეთებისთვის.
ეს წარმოადგენს კრიტიკულ ასიმეტრიას ეუკარიოტულ უჯრედულ ბიოლოგიაში: მიუხედავად იმისა, რომ მიტოქონდრიებს აქვთ საკუთარი მცირე გენომი (mtDNA), რომელიც კოდირებს მხოლოდ 13 ცილოვან-კოდირებულ გენებს, მიტოქონდრიული ცილების უმრავლესობა (~1,000 ძუძუმწოვრებში) ბირთვული კოდირებულია, სინთეზირდება ციტოპლაზმაში და იმპორტირდება მიტოქონდრიულ მემბრანებში. PGC-1α კოორდინირებს ამ ბირთვული წარმოშობის ცილების წარმოებას, უზრუნველყოფს, რომ მიტოქონდრიული ბიოგენეზი იყოს დაბალანსებული და ფუნქციური. კვლევა, რომელიც გამოქვეყნებულია Current Opinion in Cell Biology-ში, დეტალურად ახასიათებს ამ კოორდინაციას.
კლინიკურ პრაქტიკაში, PGC-1α-ს აქტივაცია არის მრავალი ვარჯიშისა და დიეტური ინტერვენციის მექანიკური სამიზნე, რომელიც მიზნად ისახავს მიტოქონდრიული ფუნქციის გაუმჯობესებას მეტაბოლურ დაავადებებში, როგორიცაა ტიპი 2 დიაბეტი.
TFAM და mtDNA რეპლიკაცია: მიტოქონდრიული ქარხნის დასრულება
მიტოქონდრიებში, მეორე ტრანსკრიფციის ფაქტორი, TFAM (მიტოქონდრიული ტრანსკრიფციის ფაქტორი A), იღებს ლიდერობას. TFAM უკავშირდება მიტოქონდრიულ დნმ-ს და ხელს უწყობს როგორც 13 mtDNA-ით კოდირებული გენების ტრანსკრიფციას, ასევე mtDNA მოლეკულის რეპლიკაციას. როდესაც TFAM-ის დონე იზრდება — PGC-1α-ს მიერ ბირთვული გენების ექსპრესიით გამოწვეული შედეგი — მიტოქონდრიული დნმ-ის ასლების რაოდენობა იზრდება, რაც უჯრედს საშუალებას აძლევს შექმნას მეტი მიტოქონდრიული ცილა და გააფართოვოს მიტოქონდრიული კომპარტმენტი.
ეს პროცესი აუცილებელია ფუნქციურად მომწიფებული ახალი მიტოქონდრიების შესაქმნელად. საკმარისი mtDNA-ის რეპლიკაციისა და TFAM-ით გაწვდილი mtDNA-ის ტრანსკრიფციის გარეშე, ახლად სინთეზირებული მიტოქონდრიული ცილები ვერ შეიკრიბებიან მთლიან, ეფექტიან ენერგიის გარდამქმნელ ორგანელებში. ვარჯიშის ადაპტაციის გამოკვლევებმა აჩვენეს, რომ mtDNA-ის ასლების რაოდენობა იზრდება პროპორციულად მიტოქონდრიულ მასასთან ადამიანის ჩონჩხის კუნთში.
ფიზიოლოგიური შედეგები: მეტაბოლური ტევადობის და უჯრედული მდგრადობის გაძლიერება
ამ კოორდინირებული პროგრამის საბოლოო შედეგია მიტოქონდრიების რაოდენობის, ზომისა და რესპირატორული ტევადობის მნიშვნელოვანი ზრდა. ადამიანის ჩონჩხის კუნთში რეგულარული აერობული ვარჯიში იწვევს მიტოქონდრიული მოცულობის სიმკვრივის 50–100% ზრდას 4–12 კვირის განმავლობაში, ვარჯიშის ფიზიოლოგიის ლიტერატურის მიხედვით. ეს ითარგმნება ჟანგბადის ფოსფორილაციის ტევადობის ზრდაში, ATP-ის წარმოების ეფექტიანობის გაუმჯობესებაში და მეტაბოლური სტრესის მიმართ უფრო დიდ მდგრადობაში.
მიტოქონდრიული ფუნქციის გაუმჯობესებას ფართო ჯანმრთელობის მნიშვნელობა აქვს. საზოგადოებრივი ჯანმრთელობის კონტექსტებში, მიტოქონდრიული ბიოგენეზის გაზრდა ფიზიკური აქტივობით და პერიოდული შიმშილით არის არაფარმაკოლოგიური სტრატეგია ასაკთან დაკავშირებული მეტაბოლური დაქვეითების, ინსულინის რეზისტენტობისა და ნეიროდეგენერაციის პრევენციისა და მართვისთვის. მექანიზმი ასევე ხსნის, რატომ აჩქარებს მჯდომარე ქცევა მიტოქონდრიული დაქვეითებას და რატომ შეუძლია სტრუქტურირებულ ვარჯიშის ინტერვენციებს ნაწილობრივ შეაბრუნოს ასაკთან დაკავშირებული მეტაბოლური დისფუნქცია.
მიტოქონდრიული ბიოგენეზი არის ზუსტად კოორდინირებული უჯრედული პროგრამა, რომელიც აქტიურდება ენერგეტიკული სტრესით, ფოკუსირებულია PGC-1α-ს მეშვეობით ბირთვული გენების ექსპრესიასა და მიტოქონდრიული დნმ-ის რეპლიკაციის შორის კოორდინაციაზე, რაც იწვევს მიტოქონდრიული მოცულობის სიმკვრივის 50–100% ზრდას რეგულარული ვარჯიშის რამდენიმე კვირის შემდეგ.
— ვარჯიშის ფიზიოლოგიის და უჯრედული სტრესის პასუხის კვლევა
რას ნიშნავს ეს
ხშირად დასმული კითხვები
რამდენად სწრაფად წარმოიქმნება ახალი მიტოქონდრიები ვარჯიშის დაწყების შემდეგ?
მოლეკულური სიგნალები (AMPK, SIRT1, PGC-1α-ს აქტივაცია) ხდება ვარჯიშის რამდენიმე საათში. მიტოქონდრიული ცილების სინთეზის ზრდა იწყება 1–2 დღეში. თუმცა, მიტოქონდრიების საერთო რაოდენობის და ჟანგბადის ტევადობის შესამჩნევი ზრდა, როგორც წესი, საჭიროებს 3–4 კვირას მუდმივი ვარჯიშის, როგორც დოკუმენტირებულია ადამიანის ვარჯიშის კვლევებში.
შიმშილი მიტოქონდრიულ ბიოგენეზს ისე ეფექტურად იწვევს, როგორც ვარჯიში?
დიახ. როგორც ვარჯიში, ასევე შიმშილი აქტივირებს AMPK და SIRT1 ენერგეტიკული დეფიციტის მექანიზმებით. თუმცა, ვარჯიში უზრუნველყოფს დამატებით სტიმულებს (მექანიკური სტრესი, რეაქტიული ჟანგბადის სახეობები), რაც შეიძლება გააძლიეროს პასუხი. კვლევები მიუთითებს, რომ პერიოდული შიმშილი და კალორიების შეზღუდვა აქტივირებს PGC-1α-ს და ზრდის მიტოქონდრიულ შინაარსს, თუმცა ადაპტაციის მასშტაბი, როგორც წესი, მცირეა რეგულარულ აერობულ ვარჯიშთან შედარებით.
შეიძლება მიტოქონდრიული ბიოგენეზი დაიკარგოს, თუ ვარჯიში შეწყდება?
დიახ. მიტოქონდრიული ადაპტაციები ძალიან დინამიურია და რევერსირებადი. რეგულარული ვარჯიშის შეწყვეტა იწვევს მიტოქონდრიული მასისა და ფუნქციის შემცირებას 2–4 კვირაში, პროცესს, რომელსაც მიტოქონდრიული დეტრენინგი ეწოდება. ეს ხაზს უსვამს ფიზიკური აქტივობის შენარჩუნების მნიშვნელობას მთელი ცხოვრების განმავლობაში მეტაბოლური ჯანმრთელობის შენარჩუნებისთვის.
მიტოქონდრიული ბიოგენეზის აღმოჩენა, როგორც რეგულირებადი, ტრენირებადი პროცესი, ფუნდამენტურად შეცვალა კლინიცისტებისა და მკვლევარების მიდგომა მეტაბოლური დაავადების პრევენციისა და მკურნალობის მიმართ. მიტოქონდრიული ფუნქცია აღარ განიხილება, როგორც ფიქსირებული, არამედ როგორც პლასტიკური თვისება, რომელიც რეაგირებს ქცევითი და გარემოსმიერი სიგნალებზე. ეს ხსნის პერსონალიზებული მედიცინის გზებს — ვარჯიშის, კვების და თერმული ინტერვენციების მორგებას თითოეული ადამიანის მიტოქონდრიული და მეტაბოლური ტევადობის ოპტიმიზაციისთვის. მომავალი კვლევები, სავარაუდოდ, გამოავლენს დამატებით მოლეკულურ გადამრთველებს და შეიმუშავებს ფარმაკოლოგიურ ინსტრუმენტებს მიტოქონდრიული ბიოგენეზის გასაძლიერებლად ასაკისა და დაავადების კონტექსტებში.